Mostrando entradas con la etiqueta piel. Mostrar todas las entradas

domingo, 29 de enero de 2012

Melanogénesis: fabricación de melanina y pigmentación cutánea


Radiaciones solares.

La melanina es un polímero de composición relativamente variable y derivado en todos los casos de un aminoácido esencial: la tirosina (Tyr). Se encuentra en las células confinado en un compartimento membranoso denominado melanosoma.

Es el pigmento más importante de la piel. Se distribuye a lo largo de todos los estratos de la epidermis, así como de las capas del pelo emergente. Es la responsable de las coloraciones marrones, amarillentas y rojizas, tanto de la piel, como de los pelos y cabello.

La función más importante de la melaniana, sin embargo, no es aportar una coloración estética o característica a la epidermis, sino defender las capas profundas de la piel de los efectos deletéreos de la radiación ultravioleta.

El sol emite radiación electromagnética que llega a la tierra proporcionando la luz, la energía y el calor indispensables para la vida. La mayor parte de la radiación que llega a la tierra pertenece a la franja infrarroja. Se trata de una radiación de longitud de onda larga. Esta no pertenece al rango visible y es la encargada de proporcionar calor. Se trata de radiaciones de baja energía y salvo las quemaduras por exceso de calor, no presentan efectos perniciosos sobre nuestra piel.

La luz visible facilita nuestra visión y nos permite diferenciar los colores. Su longitud de onda es inferior a la de los infrarrojos. Al igual que ocurre con la radiación infrarroja no presenta efectos perjudiciales de importancia.

Las radiaciones de longitud de onda más baja son más energéticas. Y en su mayor parte, perjudiciales para la salud. Las radiaciones más energéticas y peligrosas, como los rayos cósmicos o los rayos gamma no llegan a la superficie terrestre, pues son retenidos por la ionosfera.

En cambio, una parte pequeña, pero importante, de la radiación ultravioleta sí es capaz de alcanzar la superficie terrestre. La mayor parte es retenida por la ionosfera y por la capa de ozono, pero una parte de la radiación es capaz de escapar de la retención y llegar hasta la superficie.

Dentro de la radiación ultravioleta encontramos tres franjas diferenciadas. Las de menor longitud de onda, que así mismo son las más energéticas y peligrosas para la salud, son las radiaciones UVC. Apenas llegan a la superficie, pues son retenidas en su mayor parte por la capa de ozono.

Las franjas de UVB y UVA llegan a la tierra en cantidades significativas. La más energética y peligrosa, la UVB, llega en menor proporción, mientras que la UVA, menos energética, llega en mayor proporción.
Estas radiaciones son ionizantes y provocan daños de diversa índole sobre células y tejidos. Por ejemplo, alteran los enlaces químicos y provocan transformaciones en proteínas. Además, tienen capacidad de generar radicales libres.

Dímero de pirimidina
Aunque quizás el daño más importante es el que causan sobre el ADN, pues son capaces de generar dímeros de timina (una de las bases xánticas responsables del código genético). Los dímeros de timina ocasionan mutaciones en el ADN celular, lo que se puede traducir en proteínas mal conformadas, defectos en la regulación de fabricación protéica o en el pero de los casos transformación de la célula en tumoral.


Dímero de pirimidina: mutación.

No es de extrañar, por lo tanto, que la piel posea un sistema para defenderse de estas radiaciones. La melanina absorberá la radiación ultravioleta impidiendo que ocasione daños severos en los tejidos inferiores.

Melanocitos.

Aunque la melanina se distribuye a lo largo de todos los estratos epidérmicos y capilares, los queratinocitos carecen de capacidad para fabricar la melanina. Esta es fabricada por células de una familia específica, embriológicamente derivadas de la cresta neural, denominadas melanocitos.

Los melanocitos son células de morfología estrellada y ubicadas fundamentalmente en el estrato basal de la epidermis. Poseen una serie de prolongaciones que se introducen entre los queratinocitos vecinos, lo que le ayudará a cederles los granos de melanina.

La proporción de melanocitos en la capa basal de la epidermis es variable en función de la zona de piel. Hay zonas con mayor proporción, como la cara y zonas con menor proporción, como la cara interna de los antebrazos o las piernas. No obstante el promedio rondará un melanocito por cada diez queratinocitos basales.

Son fácilmente identificables tanto por su morfología peculiar, como por la cantidad de melanosomas que presentan (listos para ser enviados a las células vecinas). Además, no forman desmosomas con los queratinocitos adyacentes (los desmosomas son muy abundantes en estos estratos cutáneos y capilares).

Melanogénesis: ruta celular.

La melanina se fabrica en los melanocitos siguiendo la ruta clásica retículo - aparato de Golgi. Es decir, una ruta similar a la que seguiría si fuese una proteína que se va a exportar, aunque ni la melanina es una proteína en sentido estricto, ni el proceso de cesión a los queratinocitos es una exportación al uso.
Se trata, en realidad, de aprovechar el sistema de endomembranas para la fabricación del melanosoma, que posteriormente será enviado a los queratinocitos vecinos.

El melanosoma se fabricará primero como un sistema de endomembrana sin nada de melanina. A este sistema de endomembrana se enviarán, mediante la ruta retículo - Golgi, la familia de enzimas encargados de realizar la ruta química que lleva a la fabricación de melanina.

Analicemos el proceso.

Del retículo endoplasmático parten hacia el Golgi vesículas cargadas de proteínas que constituirán la estructura del melanosoma. En el Golgi sufren un proceso de maduración y salen en forma de vesículas por su cara trans, pasando a formar parte del sistema endosomal.

Las proteínas estructurales comienzan a formar una estructura espiral dentro del endosoma.   Comenzamos entonces a hablar de melanosoma I. En el melanosoma I no solo carecen de melanina, también carecen de los enzimas de la ruta de fabricación del polímero. La principal protéina estructural, responsable de la formación de la estructura espiral, se denomina PMEL.

Al melanosoma I comienzan a llegar vesículas del aparato de Golgi cargadas de proteínas que formarán la ruta enzimática. De entre estos enzimas, el más importante y característico es, sin duda, la tirosinasa, por tratarse del enzima que cataliza las dos primeras reacciones de la ruta. Se trata, además, de un enzima exclusivo de los melanocitos.

Cuando el melanosoma I comienza a recibir los enzimas de la ruta de fabricación de melanina pasamos a hablar de melanosoma II. En el melanosoma II la tirosinasa no ha comenzado a fabricar la melanina, pues se encuentra en forma de protirosinasa, una versión inactiva del enzima.

Tras llegar al melanosoma, la protirosinasa se asociará de alguna forma a las proteínas estructurales (PMEL) y se transformará en tirosinasa, activándose y comenzando a fabricar melanina. Cuando loa tirosiasa se activa y comienza la acumulación de melanina decimos que hemos pasado al melanosoma III. Cabe destacar que al melanosoma III pueden seguir llegando vesículas cargadas de protirosinasa provenientes de la ruta retículo - Golgi.

Poco a poco el melanosoma va cargándose de melanina, lo cual es fácilmente apreciable pues su color se torna cada vez más oscuro. Llegará un punto en el que los precursores de la melanina, fundamentalmente el aminoácido inicial de la ruta, la tirosina (Tyr) se agoten y la melanogénesis irá decayendo. Al final, con el melanosoma cargado de melanina, la tirosinasa acaba por inactivarse. La estructura fibrilar de soporte resulta inapreciable. Nos encontramos en el melanosoma IV.
Melanogénesis: ruta celular
A lo largo de todo el proceso de maduración del melanosoma este va pasando desde zonas centrales de la célula, próximas al aparato de Golgi, hacia las prolongaciones, donde serán transferidos a los queratinocitos vecinos. Los melanosomas IV avanzarán por las prolongaciones hacia los extremos para cumplir su cometido.

El proceso de traspaso se denomina secreción citocrina y no está totalmente aclarado. Parece que los queratinocitos incorporan una zona de la prolongación del melanocito en la que los melanosomas son especialmente abundantes. Se trata de una sistema con similitudes a la fagocitosis, es decir, da la sensación de que el queratinocito fagocita (o devora) una parte de la prolongación del melanocito cargada de melanosomas.
Esquema: cesión de melanina.
De este modo los melanosomas se van acumulando en el citoplasma de los queratinocitos, sobre todo en el estrato espinoso. Un solo queratinocito cederá melanosomas a un promedio de unos 36 queratinocitos.

Melanogénesis: ruta enzimática.

Analicemos ahora el proceso enzimático que lleva a la fabricación de la melanina. Se trata de una serie de reacciones en cadena que partiendo de un precursor común, la tirosina, dan lugar a toda una familia de compuestos, las melaninas. Pues aunque hemos hablado de la melanina en general, se trata de toda una familia de compuestos, de composición relativamente variable.

Veremos que, básicamente, podemos dividir las melanians en dos grandes grupos: eumelaninas y feomelaninas. Las eumelaninas son polímeros pobres en azufre y aportan las coloraciones más oscuras, desde pardas y marrones hasta el negro. Las feomelaninas son polímeros ricos en azufre y aportan coloraciones amarillentas y rojizas. Se sabe que se pueden fabricar melaninas a partir de mezclas de precursores de eumelaninas y feomelanians, obteniéndose así melaninas mixtas, con coloraciones intermedias.

El color de piel individual de cada persona deriva de la proporción y mezcla de cada uno de estos tipos de melaninas.

El primer paso de la melanogénesis es la oxidación del aminoácido tirosina y es común a la fabricación de todos los tipos de melanina. Se trata de una doble oxidación catalizada por el enzima tirosinasa, se lleva a cabo con consumo de oxígeno y transformará la Tirosina en DOPA (Dioxofenilalanina) y la DOPA en DOPA-Quinona.

En este punto la ruta diverge en dos grandes ramas que darán lugar a los dos grandes grupos de melaninas. Por un lado, la DOPA-quinona puede sufrir reacciones que la transformen en intermedirarios DOPA-cromo. Los DOPA-cromo pueden seguir dos grandes grupos, transformándose en intermediarios indol o en intermediarios indol ácidos. Ambas ramas de esta primera ruta acabarán confluyendo en la fabricación de las eumelaninas.

Por otro lado, la DOPA-quinona puede reaccionar con otro aminoácido, la cisteína (Cys), que es rico en azufre y dar lugar a Cistein-DOPA. Sucesivas transformaciones de la Cisteín-DOPA acabarán dando lugar a las feomelaninas (que como derivan de la Cisteín-DOPA, que es rica en azufra, serán también melaninas ricas en azufre).
Melanogénesis: ruta enzimática

Coloración de la piel.

La coloración de la piel dependerá entonces de varios factores. Por un lado, de los tipos de melanina que se fabriquen. Por otro, del número de melanocitos presentes en al piel. Y por último, de la velocidad a la que estos trabajen.

De todos estos factores, el número de melanocitos es el menos variable. Es decir, una persona de piel clara puede tener menor cantidad de melanocitos en general que una persona con piel negra, pero esta diferencia no será en ningún caso excesiva. La piel de la pierna de una persona de raza negra posee menos melanocitos por centímetro cuadrado que la piel de la cara de un caucásico y sin embargo su coloración es muy diferente.

Un factor muy importante es el tamaño de los melanosomas. Personas con coloraciones cutáneas oscuras presentan melanosomas de mayor tamaño. Y también es muy variable la capacidad de los melanocitos de fabricar melanosomas. Los melanocitos de personas con pieles oscuras fabrican melanina a mucha más velocidad.

Además, los colores pardos se deben a mayor proporción de eumelaninas, las pieles más claras poseen más proporción de feomelaninas.

Podemos realizar una clasificación según su color y resistencia a las radiaciones solares. Y hablaremos entonces de fototipos. Normalmente se distinguen seis fototipos, nombrados con números romanos. Los fototipos I y II caracterizaría a pieles muy claras, que no se broncean y se queman con mucha facilidad. El fototipo III sería el típico de la zona centroeuropea, relativamente oscurecida y que soporta cierta dosis solar, aunque se quema con facilidad. El fototipo IV corresponde a individuos de razas mediterráneas. El fototipo V corresponde a los mulatos. Y el fototipo VI a los negros, que no se quemarían nunca.

Control de la melanogénesis.

La melanogénesis es un proceso muy controlado. Por un lado existen una serie de condicionantes genéticos que hacen que un individuo fabrique más o menos melanina; ya comentamos que el número de melanocitos es aproximadamente el mismo en todas las personas, variando sobre manera la actividad de los mismos. También existe un cierto control hormonal: hay varias hormonas implicadas. Las dos hormonas principales que controlan el proceso son segregadas por la hipófisis, tratándose de la ACTH (adrenocorticotropina) y la MSH (hormona melanocito estimulante), que estimulan la melanogénesis. También está implicada la LPH (hormona lipotropa o lipotropina), que también estimula la melanogénesis. El MIF (factor de inhibición de la MSH, fabricada por el hipotálamo) disminuye su síntesis.

Los estrógenos y gestágenos alteran la secreción, aunque quizás no se trate de acciones directas, sino más bien reacciones cruzadas (actúan sobre otras hormonas que acaban alterando las secreciones de ACTH y MSH), por eso durante el embarazo, la menopausia o después de tumores ováricos son frecuentes las alteraciones en la pigmentación de la piel (derivados de alteraciones en la melanogénesis).
También influye la temperatura: al subir la temperatura, se estimula la melanogénesis. La radiación ultravioleta también la estimula (provoca la pigmentación tardía). Pero, además, la luz ultravioleta estimula la oxidación de la melanina, transformándola en un producto más oscuro (pigmentación inmediata).
Algunos metales pesados, como el arsénico (As), plata (Ag) u oro (Au) pueden combinarse con la melanina, provocando coloraciones características. Además, desplazan al cobre de su centro activo, provocando despigmentación. El metal más clásico que provoca despigmentación por esta causa es el mercurio (la enfermedad derivada de la intoxicación por mercurio se denomina saturnismo). Los oxidantes aclaran el color de la melanina. Por eso los oxidantes potentes, como el agua oxigenada o la hidroquinona, provocan despigmentación de la piel y el cabello.

lunes, 9 de enero de 2012

Fisiología y desarrollo de la epidermis.


División celular y cinética de la epidermis.

Estratos de la epidermis.
La epidermis, como ya hemos indicado en entradas anteriores, descama de forma continua perdiendo capas más superficiales. Esta descamación es compensada por la proliferación continua del estrato inferior, el estrato basal, que va generando células que pasan a estratos superiores.

Prácticamente las únicas células de la epidermis que sufren mitosis (es decir, las únicas células proliferativas) se encuentran en el estrato basal. Las mitosis en estratos superiores son muy poco frecuentes (pueden encontrarse células en mitosis dentro del estrato espinoso, pero no es algo común). Y no todas las células del estrato basal están en estado proliferativo de forma continua; de hecho se calcula que alrededor del 60 % de las células basales están activas en un momento dado y el resto solo se activaría si resultase indispensable (cuando se requiera un crecimiento epidérmico más intenso, para cerrar alguna herida o recuperarse de alguna lesión, por ejemplo).

Las células proliferativas entran en mitosis cada doce o catorce días de media. Estas células, al dividirse, generan células de estratos superiores (una célula pasa al estrato superior y la otra ocupa el puesto de la célula madre en la capa basal). El proceso de maduración que sufre la célula que entra en estratos superiores dura el tiempo que tarda en llegar hasta las capas altas del estrato córneo. Lógicamente, esto depende del grosor de la piel. El tiempo medio de reposición o turnover es de unos trece días. Una vez llega a estratos superiores, se mantienen un tiempo adheridas hasta su eliminación final; este tiempo ronda los trece o catorce días. El tiempo de renovación total, desde que la célula es generada por mitosis hasta que es eliminada del estrato descamativo, es de entre treinta y cinco y cuarenta y cinco días cuando la piel se encuentra en condiciones normales (en circunstancias extraordinarias, como una lesión, este tiempo puede acortarse significativamente).

Diferenciación celular y queratogénesis.

Célula epidérmica con marcaje de queratina.
Durante el proceso de ascensión por la epidermis, los queratinocitos van sufriendo una serie de cambios morfológicos y llenándose de una proteína fibrilar endurecedora denominada queratina.

El cambio morfológico más importante es el aplanamiento del queratinocito en su ascenso. En los estratos basal y espinoso son células poligonales, cuboideas; en los estratos superiores se van aplanando hasta constituir una célula totalmente aplanada en el estrato lúcido y córneo.

Estructura de hélice alfa
El proceso más característico es la queratogénesis, la fabricación de queratina por parte del queratinocito. En los estratos inferiores, el queratinocito va acumulando tonofilamentos, precursores de la queratina, que se van acumulando en el citoplasma. Se trata de tres cadenas de proteína constituidas por sendas hélices alfa y enrolladas entre si. Su estructura cuaternaria es, de este modo, un trenzado de hélices.
Estructura de la alfa-queratina

En estratos superiores estos tonofilamentos se van uniendo para formar las tonofibrillas, de mayor grosor y más consistencia. Las tonofibrillas, a su vez, se unen entre si conforme la célula asciende por la epidermis, para formar la queratina. El proceso de formación de queratina se e favorecido por la presencia de queratohialina. Los gránulos de queratohilina son característicos del estrato granular y contienen profilagrina, que se transformarán en filagrina, que a su vez constituye a la formación de la queratina formando una especie de cemento interfibrilar que une a las tonofibrillas. Es decir, que la queratina se forma por la unión de estos filamentos gracias a un componente intermediario (las filigranas).

La acumulación de queratina en el citoplasma del queratinocito hace que este se vaya deteriorando. Pierde sus orgánulos y en los estratos superiores del estrato granular ya podemos decir que la mayor parte de las células están muertas. A esto contribuye también la liberación de los enzimas lisosomales al citoplasma, que acaban de degradar todo el contenido interior del citoplasma (excepto las fibra y queratina, que son proteínas grandes y muy duras); de esta forma, la célula acaba sin orgánulos, con el núcleo muy deteriorado, pero cargada de queratina.

En el estrato granular, en la parte superior sobre manera, los queratinocitos vierten al exterior el contenido de los gránulos denominados corpúsculos de Odland (que empiezan a aparecer en el estrato espinoso), liberando así al espacio intercelular sustancias cementantes. Se trata de ceramidas, una familia de lípidos muy hidrófobos que se establecen en capas y además de formar un cemento, constituyen una importante barrera hidrófoba (evitan la pérdida de agua o la entrada de líquidos acuosos desde el exterior).
La queratina es una proteína fibrilar constituida por fibras helicoidales trenzadas. Es rica en un aminoácido denominado cisteína, que contiene azufre; este azufre es importante ya que forma puentes disulfuro entre dos aminoácidos de cisteína (formando lo que se denomina cistina) de dos cadenas trenzadas. Es una forma de estabilizar la queratina y endurecer el trenzado (evitan que las cadenas se separen unas de otras e incluso que se desplacen unas respecto a las otras).

En el ser humano diferenciamos dos grandes tipos de queratina. Por un lado encontramos la queratina blanda, pobre en azufre (en cisteína) y rica en queratohialina (basa la unión entre fibras en este cemento, en lugar de basarlo en multitud de enlaces químicos covalentes, muy fuertes); esta queratina aparece en la piel y vainas epiteliales del pelo. Por otro lado encontramos la queratina dura, pobre en queratohialina y rica en azufre (por lo tanto, presenta abundantes enlaces disulfuro, con lo que el trenzado es mucho más resistente); esta queratina constituye los anexos cutáneos fuertemente cornificados, es decir, pelos y uñas.

Existen una serie de factores metabólicos y fisiológicos que estimulan o inhiben la proliferación de las células epidérmicas y la queratogénesis. Entre los estimulantes de estos procesos destacan los andrógenos (hormonas sexuales masculinas), el factor de crecimiento epidérmico (se trata de una hormona que se segrega cuando se requiere incrementar la velocidad de recambio de la piel) y la vitamina A. Entre los inhibidores de este proceso destaca, entre otros, la vitamina D.

viernes, 16 de diciembre de 2011

Funciones de la Piel

Tras analizar la anatomía de las diversas partes de la piel, ahora pasamos a analizar algunos aspectos fisiológicos. Y el primer aspecto fisiológico será analizar las funciones más importantes que cumple la piel.

Las clasificaremos en cuatro grandes categorías: funciones de protección, relación, regulación y funciones metabólicas.

Protección.

Es la función más evidente, ya que la piel supone una barrera que separa el interior de nuestro cuerpo del exterior. Nos protege de todo tipo de agresiones exógenas. Podemos dividir esta protección en varios grupos:

Protección frente a agentes mecánicos: la piel nos protege frente a fricciones, contusiones, intentos de penetración de cuerpos extraños, etc. Solo tenemos que pensar lo delicadas que son las zonas en las que la piel está adelgazada o carecen de cubierta epidérmica. La principal capa de protección es la epidermis, por su dureza. La dermis aporta elasticidad y firmeza asociadas, pero no es una capa dura. También colabora en la protección física el panículo adiposo, frente a golpes bruscos.

Protección frente a agentes físicos: existen muchos agentes físicos cuyos daños sobre el cuerpo son atenuados por la piel. Por ejemplo el calor, evitando que el calor haga que cambie la temperatura de nuestro cuerpo; la piel evita quemaduras graves en órganos internos. Es resistente a la corriente eléctrica. Y sobre todo actúa como barrera frente a la radiación ultravioleta; es absorbida por el estrato córneo, sobre todo por la melanina.

Protección frente a agentes químicos: la piel actúa como una barrera que impide que la mayor parte de las sustancias químicas puedan pasar al interior, así como contra la acción de agentes corrosivos o cáusticos (es más resistente a los ácidos que a las bases); además de evitar la deshidratación por la salida de agua (evapotranspiración). La barrera frente a agentes químicos es llevada a cabo, principalmente, por la epidermis (hablaremos en más profundidad cuando tratemos el tema de la permeabilidad cutánea).

Protección frente a agentes biológicos: la piel se opone tanto a la penetración como a la colonización superficial de la mayor parte de los microorganismos; existe, eso si, una flora bacteriana natural sobre la piel, microorganismos adaptados a vivir en su superficie  que no solo no nos causan daños, sino que además evitan la instauración de agentes biológicos indeseables, patógenos como hongos y bacterias. 

La entrada cutánea de microorganismos a través de la piel se debe, en la inmensa mayoría de los casos, a lesiones superficiales en la epidermis. Algunos microorganismos son capaces de penetrar aprovechando las glándulas y los folículos pilosos.

Relación.

En la piel se encuentra el sentido del tacto, por lo cual es un órgano de recepción de estímulos del exterior. Por la piel recibimos sensaciones de tacto, presión, temperatura (frío y calor), dolor, etc. Además, la piel es nuestra superficie exterior, la que mostramos a los demás y esto también está implicado en los procesos de relación; la piel resulta importante en nuestras relaciones sociales, tanto a nivel de aspecto como tacto, olor, etc.

Regulación corporal.

La piel controla tres aspectos básicos de la regulación corporal, es decir, de la homeostasis: la temperatura, el equilibrio hídrico y el volumen de sangre circulante. Analicémoslo individualmente:

Regulación de la temperatura corporal: la piel es imprescindible en el mantenimiento de la temperatura corporal, corrigiendo variaciones ya sean de origen interno (fiebre, elevación de la temperatura corporal por acción muscular intensa, etc.), o de origen externo (frío o calor ambiental). Para ello se dispone de varios mecanismos:

Existe un aislamiento físico respecto al exterior que frena los flujos de calor en ambas direcciones y que está constituido fundamentalmente por el panículo adiposo.

La posibilidad de variar el tono vascular de los vasos sanguíneos de las diferentes zonas de la dermis, así como las anastomosis presentes en el sistema circulatorio suponen un mecanismo muy eficaz para luchar contra las variaciones térmicas. Cuando se eleva en exceso la temperatura en el interior del cuerpo (bien por motivos internos, bien por motivos externos), se produce una vasodilatación y aumento de flujo en los vasos sanguíneos periféricos, lo que permite que el calor se escape por convención en mayor medida; de ahí que, cuando hace mucho calor o realizamos un ejercicio intenso, nuestra piel enrojece (aumenta su flujo sanguíneo periférico). En cambio, ante descensos de la temperatura exterior (o, de forma menos común, bajadas de la temperatura interior del cuerpo) se reduce el calibre y el flujo de sangre a los vasos sanguíneos periféricos, para evitar en la medida de lo posible pérdidas de calor, quedando abiertos los que circulan por debajo del panículo adiposo (estos ceden poco calor) y dirigiéndose la sangre a zonas más profundas de nuestro cuerpo.

Producción de sudor por parte de las glándulas sudorípara ecrinas. El sudor aporta una capa de agua sobre la piel que, al evaporarse, absorbe calor de la piel, produciendo así una bajada de la temperatura de su superficie.

Existe un cuarto sistema, cuya importancia es controvertida; la contracción de los músculos erectores del pelo (que nos ponen la piel de gallina) genera una pequeña cantidad de calor (posiblemente insignificante ante las contracciones involuntarias de músculos esqueléticos en situaciones de frío intenso, es decir, la tiritona, que sí supone una elevación importante de la temperatura corporal al aprovechar el calor generado por los músculos; pero este no es un sistema que implique directamente a la piel).

Equilibrio hídrico y electrolítico: la piel pierde agua de forma constante por evaporación, un proceso denominado perspiración insensible; además, puede eliminar cantidades mucho más elevadas de líquidos, con sales minerales disueltas, mediante la sudoración (hasta tres litros a la hora o diez litros al día). No es una función en si misma, sino el efecto producido por otras funciones; sin embargo, no cabe duda de que la piel contribuye en control iónico y el volumen de líquido corporal, así como la cantidad de agua de la sangre (de hecho, en situaciones de escasez de agua, la piel se resiste en mayor medida a perder agua y en situaciones de exceso permite que esta fluya, por ejemplo mediante la sudoración, con mayor facilidad).

Volumen de sangre circulante: en la red de vasos sanguíneos de la dermis puede llegar a acumularse hasta el 10 % del volumen total de sangre de nuestro cuerpo, que puede movilizarse en un momento determinado si fuese necesario (por necesidades musculares de sangre, debido a una bajada de tensión o del volumen de sangre, etc.).

Metabolismo.

La piel posee varias funciones relacionadas con el metabolismo general del cuerpo:

Síntesis de Vitamina D: la vitamina D, encargada de la absorción y metabolismo del calcio y fósforo, se sintetiza a partir de un derivado del colesterol, por la acción sobre este de la radiación ultravioleta. Por lo tanto, la vitamina D debe fabricarse en un lugar donde incida la radiación ultravioleta, por lo tanto la piel (en realidad en la piel se sintetiza el denominado D3, que es modificado en el hígado y riñón, que son los lugares finales donde se obtiene la vitamina activa).

Función endocrina: la piel actúa como receptor de muchas hormonas (sobre todo de hormonas sexuales) y es en la piel donde muchas de ellas se modifican, generándose las hormonas realmente activas; por ejemplo, a la piel llega la testosterona, que es la hormona sexual masculina, pero que presenta muy poca actividad biológica y en la piel se transforma, por la acción del enzima 5α-reductasa, en la DHT (dihidrotestosterona), que es la hormona realmente activa.

Función excretora: mediante el sudor puede excretarse y por lo tanto eliminarse, por vertido al exterior, tanto iones (de los que ya hablamos en el mantenimiento de la homeostasis), como sustancias tóxicas y de desecho en pequeñas cantidades (desde sustancias tan habituales como la urea y el ácido úrico a sustancias tóxicas ingeridas del exterior, como restos de medicamentos).

Función inmunológica: la piel es el primer órgano que suele recibir a los agentes externos invasores; por eso tiene muy desarrollado el sistema inmunológico. La respuesta inmunológica comienza en la epidermis, pero se lleva a cabo sobre todo en la dermis.

domingo, 11 de diciembre de 2011

Infestaciones más habituales de la piel


Introducción.

Entendemos como infestaciones la invasión por seres vivos que no son microorganismos. Las más frecuentes son producidas por artrópodos. Y además de los problemas que puedan causar directamente mediante picaduras, algunos son capaces de colonizar nuestro cuerpo o portar infecciones asociadas.

Analizaremos las infestaciones cutáneas más habituales, producidas por artrópodos. En otro post analizaremos otras infestaciones independientes de la piel, como las causadas por nemátodos (lombrices y anisaqui, entre otras).

Pediculosis.

Las pediculosis son infestaciones producidas por piojos. Los piojos son insectos del orden Anoplura. En el ser humano existen tres tipos de piojos que causan tres afecciones diferentes:
Pediculus humanus (piojo)
  • Pediculus humanus s.p. capitis: se trata del piojo de la cabeza y causa la pediculosis capilar, que es la más frecuente.
  • Pediculus humanus s.p. corporis: se trata del piojo del cuerpo y causa la pediculosis corporal.
  • Pthirius pubis: más conocida como ladilla, es el piojo que infesta la región genital.
Phiriuos pubis (ladilla)
Son insectos de pequeño amaño que se alimentan de la sangre humana. Se reproducen mediante unos huevos denominados liendres. Los del cuerpo son difíciles de localizar, ya que se esconden entre las costuras de la ropa y solo las abandonan para alimentarse. Los del cabello son también difíciles de ver, siendo más frecuente la localización de las liendres, sobre manera ancladas al cabello de la zona occipital.
Liendre (huevas de piojo) anclada la pelo

Para eliminar una infestación por piojos no solo debemos eliminar los piojos adultos, también debemos exterminar sus huevas o liendres. Una opción habitual es aclarar el pelo con vinagre tras el lavado con champú antipiojos (que suele ser muy efectivo con los adultos, pero no tanto con los huevos). El ácido acético del vinagre disuelve el anclaje de la liendre al pelo y esta puede ser retirada con un peine (mejor usar un peine especial, con cerdas muy juntas, denominado liendrera).

Los champús antipiojos suelen incorporar sustancias tóxicas para el insecto cuya toxicidad para humanos es reducida, pero no nula (como el melathion). Por eso nunca deben usarse como método preventivo. Hoy en día existen antipiojos basados en recubrimientos de un derivado de silicona (dimenticonas) que envuelve a los piojos y liendres y los elimina por asfixia, resultando bastante efectivos con una toxicidad nula para el humano.

Es conveniente, indispensable incluso en las pediculosis corporales, completar con un proceso de higiene exaustivo de la vestimenta y la ropa de cama, con lavado en agua muy caliente y planchado al vapor.

En caso de que alguna prenda no tolerase el lavado y planchado en esas condiciones, existe la posibilidad de almacenarla en una bolsa cerrada de la manera más hermética posible. Se dejaría la bolsa en esas condiciones un par de semanas, tiempo más que suficiente para que piojos y liendres mueran de inanición.

Pulicosis.

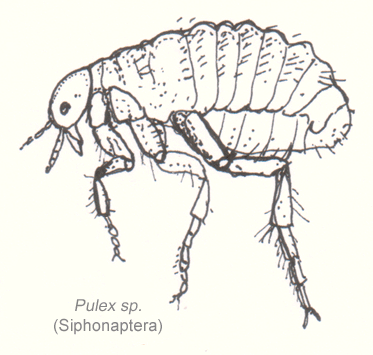
Pulex sp. (pulga)
Infestación provocada por las pulgas, insectos del orden Sifonaptera. Cada mamífero tiene su propia pulga. La pulga humana, poco habitual, se denomina Pulex irritans. Aunque son frecuentes las picaduras de la pulga del perro (Ctenocephalides canis), del gato (Ctenocephalides felis) o de otras especies. Estas otras pulgas no suelen invadir de forma permanente el cuerpo humano, sino que lo usan como vehículo hasta encontrar un animal de la especie de la que son características.

Son importantes transmisoras de enfermedades asociadas. La más conocida por su gravedad es la peste bubónica, enfermedad originaria de las ratas (causada por la bacteria Yersinia pestis) y que pasa al hombre cuando es invadido por la pulga, que lo utiliza como vehículo y al que transmite la enfermedad por medio de la picadura.

Sarna.

Sarcoptes scabiei
La sarna es una infestación producida por un artrópodo de la clase de los Aracnidos y orden de los Acarinos (es decir, un ácaro), denominado Sarcoptes scabiei. La hembra de esta especie realiza incisiones en la piel, fabrica canales intraepidérmicos donde deja sus huevos. Al realizar este canal, origina un picor muy intenso y deja una señal acanalada muy característica. Se trata de una señal a modo de arañazo, alargada y rectilínea (corresponde al canal), generalmente con un pequeño abultamiento en ocasiones perlado en uno de los extremos (ahí se encontraría la hembra del ácaro realizando la puesta).

Es un artrópodo de hábitos nocturnos, por lo que los picores se hacen mucho más intensos por la noche. En el extremo del surco queda una vesícula perlada donde se cobija la hembra que ha puesto los huevos.
Lesiones de la sarna
La lesión acanalada suele ir acompañada por marcas y lesiones derivadas del rascado (pueden originarse infecciones asociadas).

Se trata de una infestación muy contagiosa, por lo que lo más habitual es que se presente en varios miembros de la misma familia (o comunidad), sobre todo aquellos que comparten cama o ropas.

Se eliminan con pesticidas y requieren, al igual que en puliculosis y pediculosis corporal, la limpieza exaustiva con agua muy caliente y planchado al vapor de la ropa, a fin de eliminar posibles individuos que se hayan resguardado entre la vestimenta o en la ropa de cama.

miércoles, 16 de noviembre de 2011

Anexos cutáneos: glándulas sudoríparas


En el cuerpo humano podemos distinguir dos tipos de glándulas sudoríparas, que difieren tanto en su anatomía y morfología como en su fisiología y funciones. Son las glándulas sudoríparas ecrinas y las glándulas sudoríparas apocrinas.

Anatomía de las glándulas sudoríparas ecrinas.

En el cuerpo humano tenemos entre dos y cuatro millones de glándulas sudoríparas ecrinas. Ocupan toda la superficie cutánea, excepto los labios, lecho ungueal (bajo las uñas), labios menores, glande y cara interna del prepucio. El número máximo de glándulas sudoríparas ecrinas se encuentra en las palmas y plantas, con entre 600 y 800 glándulas por centímetro cuadrado. Y el mínimo, en los flancos del cuerpo, con entre 50 y 150 glándulas por centímetro cuadrado.
Dermatogrifos. Pueden verse poros de glándulas.

La glándula está constituida por un ovillo secretor, instalado en zonas profundas de la dermis, que desemboca al exterior mediante un conducto; en la zona de desembocadura habrá un orificio o poro secretor. A la porción de epidermis en la que desemboca la glándula se le denomina acrosiringium.

El sudor es fabricado en el ovillo y modificado en su trayecto al exterior, absorbiendo parte del agua y el sodio. En el ovillo secretor encontramos un grupo de células llamadas células oscuras, que están en contacto con la luz del tubo, pero que no llegan a contactar con la membrana basal y que se encargan de fabricar una sustancia mucoide que, presumiblemente, facilita la expulsión del sudor. Y las células claras, que están en contacto con la membrana basal o con las células mioepiteliales y que llegan a la luz del tubo en algunas zonas, por medio de ramificaciones que se cuelan entre las células oscuras; se encargan de fabricar el sudor. Por último están las células mioepiteliales, contráctiles, cuya función sería impulsar el sudor hacia el exterior; estas células no forman una capa continua, sino que aparecen de cuando en cuando. El conducto, a diferencia del ovillo, está formado por células epiteliales cúbicas y algunas células mioepiteliales (no hay células claras y oscuras).
Esquema de la Glándula Sudorípara Ecrina
El principal componente del sudor es el agua, existiendo otros componentes, como las sales minerales, urea, ácido úrico, etc.

La glándula está fuertemente irrigada e inervada. El principal control glandular es llevado a cabo por el sistema nervioso autónomo.

El sudor ecrino es un líquido transparente y de sabor salado. Su principal componente es el agua (99%), en la que se encuentran disueltas sales minerales, especialmente cloruro sódico y potásico, así como sustancias orgánicas, principalmente urea, aunque también aminoácidos, ácido láctico y ácido pirúvico. Podemos encontrar, así mismo, sustancias de excreción, que el cuerpo intenta eliminar, como metales, compuestos orgánicos tóxicos o derivados de medicamentos. También podemos encontrar cantidades muy bajas de otras sustancias orgánicas, como glucosa o proteínas (glucoproteínas, glucopolisacáridos e incluso inmunoglobulinas). El pH del sudor oscila entre 4 y 6 (es decir, ligeramente ácido).

Es fabricado en el ovillo y modificado a lo largo del tubo secretor. Las dos funciones fundamentales del sudor son la excretora y sobre todo la termorregulador.

El sudor puede segregarse por varios motivos. Por un lado, existe una pequeña sudoración constante, que hace que éste ayude en la hidratación a la capa córnea de la piel, además de aportar ciertos componentes del denominado factor natural de hidratación (de sus siglas en inglés, NMF). Además, algunos de los componentes del sudor, como el ácido urocánico, actúan como filtro ultravioleta, absorbiendo los UVB. Y debido a su pH, funciona como antifúngico y antiséptico.

La sudoración profusa es desatada por mecanismos en los que interviene el sistema nervioso autónomo. Se deberá, fundamentalmente, a respuestas nerviosas ante una aumento de la temperatura corporal y es desatada por el sistema nervioso simpático (si que, aparentemente, el parasimpático juegue ningún papel, ni activado ni inhibidor). Pero también existe una respuesta sudoral psíquica o emocional, ante situaciones de estrés (nerviosismo, ansiedad, miedo, dolor, etc.).


Anatomía de las glándulas sudoríparas apocrinas.

Aunque su morfología general es similar a las ecrinas, presenta varias diferencias. Es, al igual que la ecrina, una glándula con forma de ovillo, pero en este caso es algo más grande (alrededor de diez veces mayor). Están asociadas a folículos pisosebáceos de determinadas zonas del cuerpo: región anogenital, periumbilical, vestíbulo nasal y axila (es decir, vierte su contenido a un folículo piloso de esas zonas).

Como su nombre indica, su secreción se realiza de forma apocrina: el ovillo está constituido por una sola capa de células secretoras rodeadas, en algunas zonas, por células mioepiteliales. Estas células secretoras, por pérdida de su parte superior, originan una secreción altamente viscosa y de apariencia lechosa denominada sudor apocrino. El sudor apocrina comienza a segregarse durante la pubertad y desciende en la vejez. Esto ya nos da a la idea de su control hormonal, mediado entre otras por las hormonas sexuales. 
Esquema de la disposición de la Glándula Apocrina.
Fabrica un sudor ligeramente alcalino y poco oloroso, pero que es fácilmente degradado por bacterias, originando un olor muy característico. Parece claro que es un sistema de secreción de feromonas, es decir, hormonas que actúan en el exterior del cuerpo y sobre otros individuos (estaría relacionado con fenómenos de atracción y repulsión personal, sexual o social, por ejemplo).

jueves, 3 de noviembre de 2011

Anexos cutáneos: Anatomía del Folículo Piloso


Pelo visto con lupa binocular

Los pelos son un tipo de anexo cutáneo queratinizados, perteneciente al grupo de las faneras (dentro de las que se engloban las escamas de los peces o las plumas de las aves). Su morfología es filamentosa, alargada y flexible, aunque bastante resistente a la tracción. Se forman a partir de una invaginación de la epidermis en la dermis, ensanchada en su parte inferior y que se denomina folículo piloso. El pelo emerge perpendicularmente o, más comúnmente, de forma ligeramente oblicua al plano epidérmico. Está constituido por células epidérmicas cargadas de queratina, aplanadas y fuertemente empaquetadas, formando una estructura filamentosa y cilíndrica de sección circular o ligeramente elíptica.

En el cuerpo existen pocas zonas no recubiertas de pelo y denominadas zonas glabras: palmas y plantas, lados de los dedos (tanto de manos como de pies), superficie lateral de los pies por debajo del tobillo, labios y semimucosas genitales (glande y prepucio en el pene, clítoris, labios menores y cara interna de los labios mayores en los genitales externos femeninos). El resto del cuerpo está cubierto de pelos, de mayor o menor tamaño. Algunos de gran tamaño, como los cabellos, en la cabeza (tenemos entre cien mil y ciento cincuenta mil cabellos), cuyo diámetro puede llegar a los 0,6 milímetros y su longitud superar el metro. Otros son casi imperceptibles o solo visibles con lupa y diámetros de grosor de 0,005 milímetros y longitudes de menos de un milímetro.

Anatómicamente podemos diferenciar dos grandes tipos de pelo; por una parte está el lanugo, que recubre la piel del feto y que se pierde en los meses posteriores al nacimiento. Y el pelo terminal, que cubre el cuerpo sustituyendo al lanugo en los meses posteriores. Este pelo terminal, a su vez, resulta muy variable en cuanto a su morfología y distribución; ésta varía, además, en función del estado de desarrollo y madurez del individuo y del sexo, siendo una característica sexual secundaria. Incluso diferentes razas presentan pequeñas variaciones en esta distribución.

Así, por un lado, tenemos los pelos largos y flexibles que aparecen en el cuero cabelludo, pubis y axilas (en ambos sexos), barba y bigote de los hombres; y una cierta cantidad en brazos y piernas, más abundantes en hombres que en mujeres. Por otro lado, están el pelo corto y rígido de las cejas, pestañas y vibrisas de la nariz y oído externo. Por último, teneos el pelo corporal fino, invisible, denominado vello (en algunas zonas aumenta su tamaño hasta transformarse en un pelo largo y flexible, como lo hemos indicado en brazos y piernas).

La función original del pelo es el de protección, frente al sol, al frío y la deshidratación. En los seres humanos todas estas funciones están muy venidas a menos (nos cubrimos con ropas), aunque aun conservamos ciertas reminiscencias de sus funciones originales: cuando hace frío o ante situaciones de estrés, se nos erizan los pelos (piel de gallina). Como hemos visto, existe un claro dimorfismo sexual en la distribución del pelo, por lo que originalmente también supuso un sistema de identificación sexual. Además, parece demostrado que el pelo participa en la reparación de la piel, aportando células germinativas de su folículo ante situaciones de daños severos en la epidermis. También suponen parte del sistema sensorial de la piel (tienen asociados nervios). Y algunos tipos de vibrisas son importantes para la protección de estructuras delicadas: evitan que penetren pequeños objetos y contaminantes o agua en los ojos, nariz u oídos. Sin embargo, podemos decir que su función más importante hoy en día es meramente estética.

Como ya hemos indicado, el pelo nace de una invaginación de la epidermis en la dermis denominada folículo piloso. Ahí se encuentra el nacimiento del pelo, comúnmente llamado raíz. Al pelo propiamente dicho le llamaremos tallo del pelo y al canal por el que emerge al exterior, conducto o infundíbulo piloso.

El folículo piloso es una estructura cilíndrica con un abultamiento en la parte inferior denominado bulbo piloso. En ese bulbo piloso existe una invaginación de pequeño tamaño de tejido conjuntivo dérmico dentro del folículo que denominada papila capilar. En esta papila penetran vasos sanguíneos y nervios que nutren y dan sensibilidad al pelo respectivamente. Sobre la papila del pelo se encuentran un grupo de células germinativas, similares a las células basales del estrato basal de la epidermis, que se dividen de forma continua originando, con estas mitosis, células pilosas que empujan a las superiores, haciendo de esta forma crecer al pelo. A estas células germinales se les denomina matriz capilar. 

A diferencia de las células de la epidermis, las células de la matriz capilar no trabajan de forma continua, sino que pasan por periodos de trabajo (fase anágena del crecimiento) y fases de reposo, en las que el pelo deja de crecer, muere y acaba por desprenderse (fase telógena del crecimiento); entre ambas fases existe una interfase de transición, de paso entre el folículo en crecimiento y el folículo en reposo (fase catágena del crecimiento). Entre las células de la matriz se encuentran, además, melanocitos encargados de ceder melanina a las células que conformarán el pelo, aportando así la coloración del mismo.
Las células de la matriz general el pelo que va creciendo y transformándose a lo largo del folículo piloso, pues las células van cargándose de queratina en su ascensión, formando la estructura final, dura pero flexible. A la zona del folículo donde tiene lugar la queratinización se le denomina zona queratóngena.

El pelo generado por la matriz consta de tres grandes zonas. Una interior, delgada y presente solo en pelos gruesos, denominada médula. Alrededor de esta, otra capa de células de mayor tamaño, cargadas de queratina y granos de malanina, que constituyen el grueso del pelo y se denominan corteza o córtex. Recubriendo a la corteza se encuentra la cutícula, formada por células aplanadas y que constituyen la envuelta más exterior del pelo cuando este emerge a la superficie (forman una cubierta a modo de tejas de un tejado).
Folículo Piloso (del libro Anatomía de Grey)

La matriz también genera una serie de capas que rodean al pelo cuando se encuentra dentro del folículo y que se desprenden al exterior durante el proceso de crecimiento del pelo; constituyen una vaina denominada vaina radicular interna y a su vez está formada por tres capas: la cutícula de la vaina radicular interna, en contacto directo con el pelo; la capa de Huxley; y la capa de Henle.

Esta última está en contacto con el tejido epitelial que constituye la pared del folículo piloso y que se denomina vaina radicular externa; esta tiene unas características similares a las de la epidermis, con la que se continua.
Rodeando al folículo piloso encontramos una membrana de tejido conjuntivo fibroso que lo separa de la dermis y se denomina membrana vítrea.
Corte transversal del folículo piloso (de Anatomía de Grey)
 Como ya hemos indicado, en la matriz del folículo se encuentran los melanocitos encargados de dar color al pelo. No solo existen diferencias raciales y personales en el color del pelo, también son frecuentes las diferentes coloraciones dentro de un mismo individuo, tanto entre pelos de diferentes zonas (los de las cejas, por ejemplo, suelen ser mas oscuros), como dentro de una misma zona (no son raras las personas que tienen cabellos de tres colores diferentes, siendo uno de los colores el claro predominante).
Estructura del folículo piloso
 Los folículos suelen llevar asociado un músculo que los conecta con la epidermis permitiendo, con su contracción, variar el grado de perpendicularidad del mismo respecto a la superficie de la pie; es el músculo erector del pelo.

Los pelos tienen su folículo rodeado por una red de capilares que lo nutren, sobre todo los pelos de gran tamaño; y poseen una red nerviosa a su alrededor que los convierte en parte del sistema sensorial.
Todos los pelos llevan asociado una anexo cutáneo muy importante, ya que va a caracterizar el tipo de piel: la glándula sebácea.

domingo, 9 de octubre de 2011

El órgano cutaneo: dermis e hipodermis.


Piel.

La dermis es la parte interna de la piel, que se encuentra por debajo de la epidermis. Se trata de una zona de tejido conjuntivo laxo, cuyo grosor medio es de entre uno y dos milímetros, existiendo zonas más delgadas (como los párpados, donde su grosor es menor de 0,6 milímetros) y zonas más gruesas (como las palmas de manos y plantas de pies, donde su grosor pueden superar los 3 milímetros). La separación entre la dermis y la hipodermis no forma una línea o barrera definida y neta (como ocurre con la epidermis), sino que es una transición, un cambio progresivo.

Se une a la epidermis por medio de la membrana basal; esta es una membrana fibro–protéica que une firmemente ambos tejidos, los comunica, permite el aso de sustancias de uno a otro, tanto de la dermis a la epidermis (nutrientes, por ejemplo) como de la epidermis a la dermis (sustancias de desecho, mensajeros, etc.).

La unión entre la epidermis y la dermis no es lisa, sino que tiene una serie de ondulaciones, entrantes y salientes, denominados papilas dérmicas. Éstas, por un lado, aumentan la superficie de contacto entre ambos tejidos (mejorando, por ejemplo, todo lo referente a sensibilidad o intercambio de productos) y además evitan que la epidermis se desplace linealmente sobre la dermis.

El tejido conjuntivo que forma la dermis es una auténtica estructura fibrilar y esponjosa. Posee multitud de fibras para darle firmeza y elasticidad a la piel, así como sustancias capaces de retener agua, transformando la sustancia fundamental amorfa en una especie de gel, de líquido acuoso denso que actúa como almohadillado.

Embriológicamente la dermis deriva del capa embrionaria denominada mesodermo.

En la dermis podemos diferenciar dos grandes zonas (aunque no están netamente separadas), una zona superior denominada dermis papilar y una zona inferior denominada dermis reticular.

La dermis papilar es la zona dérmica en contacto con las papilas dérmicas (de ahí su nombre). Es un tejido conjuntivo más laxo, con haces de colágeno finos. Aparecen multitud de vasos sanguíneos que nutren la epidermis por difusión. Las células dérmicas son más abundantes.

La dermis reticular es la parte inferior, de mayor tamaño y se une o se difumina con la hipodermis. Se trata de un tejido conjuntivo más denso, con redes de colágeno más gruesas y densas, colocadas principalmente de forma paralela a la epidermis.

En algunas zonas del cuerpo, bajo la dermis reticular, encontramos una capa muscular. En los humanos, esta capa muscular es especialmente importante en la cara, donde se encuentran los músculos de la mímica (permite movimientos superficiales de la piel).

Vamos a analizar los componentes de la dermis.

Sustancia fundamental amorfa.

Está cargada de sustancias con capacidad de retener agua. La más habitual, proteínas unidas a mucopolisacáridos ácidos (cadenas especiales de azúcares siendo los más importantes los glucosaminoglicanos), formando lo que se denomina proteoglicanos (de los que ya hemos hablado). El resultado es un gel acuoso, denso.

Fibras dérmicas.

Analicemos las fibras dérmicas más importantes:
  • Colágeno: es la proteína fibrosa más importante de la dermis, pudiendo constituir hasta el 75 % de su peso seco. Ofrece a la piel resistencia frente a traumatismos físicos y limita el grado de tensión de la misma. Constituye el auténtico armazón, es el que le da a la dermis una auténtica consistencia sólida. El colágeno es fabricado por los fibroblastos. Realmente estos fabrican una estructura de menor tamaño, formada por el trenzado de unas fibras protéicas helicoidales llamado procolágeno, rico en los aminoácidos prolina, hidroxiprolina  glicina; el procolágeno es fabricado en el retículo endoplásmico rugoso y enviado al exterior por el aparato de Golgi. En el exterior de la célula se modifica, formando el tropocolágeno, que se polimeriza (se unen muchas fibras de tropocolágeno unas con otras), formando el colágeno. El colágeno así formado es una proteína fibrilar de gran tamaño, visibles al microscopio óptico.
  • Elastina: se trata de una proteína fibrilar de propiedades elásticas (como su nombre indica). Suelen ser de menor tamaño que las fibras de colágeno y se acumulan principalmente en zonas de la dermis reticular. Son capaces de estirarse y recuperar su posición inicial. Facilitan que, tras un estiramiento, la piel recupere su posición normal. Su deterioro (con el paso de los años) provoca la aparición de elastosis. Son fabricados por los fibroblastos, de modo similar al del colágeno.
  • Fibras Reticulares (Reticulina): son parte fundamental de las fibras de la membrana basal. Son fibras de menor diámetro que las colágenas, forman una red muy fina. Pueden encontrarse también en la dermis papilar, mezcladas o unidas, o prolongadas con los elementos que constituyen la membrana basal. No obstante, son escasas (normalmente menos del 1 % del total de fibras). Se incrementa su número durante procesos inflamatorios. Está formado por la unión de fibras finas de colágeno con una glucoproteína llamada fibronectina.

Células de la dermis.

Analicemos los tipos celulares más importantes de la dermis:
  • Fibroblastos: constituyen el tipo celular más característico del tejido conjuntivo y por lo tanto de la dermis. Se les considera células fijas (no se mueven). Aparecen con más frecuencia en la dermis papilar. Poseen forma estrellada, con largas prolongaciones. Su función es fabricar y mantener en buen estado las fibras de la dermis y la sustancia fundamental amorfa. Resultan especialmente activos tras lesiones en la dermis o durante los procesos de cicatrización.
  • Macrófagos: células de mayor tamaño que los fibroblastos, de morfología esférica y núcleo arriñonado, que participan en la defensa del organismo. Su función es fagocitar las sustancias u organismos extraños que encuentren, microorganismos invasores desconocidos, etc. para dar aviso a las células fabricantes de anticuerpos.
  • Células Plasmáticas: células de pequeño tamaño, con un gran núcleo redondeado y abundante retículo endoplásmico rugoso. Derivan de los linfocitos y su función es fabricar anticuerpos.
  • Células Cebadas: células defensivas que responden a la presencia de anticuerpos con la secreción de sustancias inflamatorias o compuestos químicos que activan la respuesta inmunológica ante invasiones.
  • Adipocitos: aunque son más característicos de la hipodermis, pueden aparecer en estratos inferiores de la dermis o en la interfase dermo – hipodérmica.

Corte transversal de piel.
En la imagen, en la que vemos un corte transversal de piel al microscopio electrónico, podemos apreciar la epidermis, en la zona superior y la dermis en la inferior. El color azul claro o azul celeste corresponde al colágeno. Se trata, como vemos, de una proteína muy abundante. En color azul oscuro vemos los núcleos de diferentes células dérmicas, difíciles de interpretar a estos aumentos. La mayor parte corresponderá a fibroblastos. Es notorio el hecho de que en la zona superior de la dermis, la dermis papilar, la carga celular es mucho mayor (aparecen muchos más núcleos) y en la parte inferior, en cambio, los grandes haces de colágeno son mucho más aparentes.

Anatomía de la hipodermis.

Es la continuación en profundidad de la dermis y está constituida por un tejido conjuntivo laxo. Sus fibras son, en general, más finas que en la dermis, aunque existen algunas zonas en las que se ancla firmemente por medio de estas a los tejidos subyacentes, por ejemplo en palmas de manos. Las fibras se continúan con las de la dermis y como ya indicamos no existen cambios bruscos entre ambos tejidos, sino más bien una transición.

En la mayor parte de las zonas de la piel, la hipodermis acumula células de reserva de grasa (almacén de energía), los adipocitos (existen excepciones, por ejemplo la hipodermis de los párpados no los presenta). Estos adipocitos se disponen inmersos en una red de fibras; su función es acumular energía y constituir una barrera de protección, fundamentalmente protección térmica (esta es una de las razones por las que la hipodermis es un tejido muy vascularizado: los vasos sanguíneos de estas zonas pierden poco calor).

La acumulación de adipocitos es variable, en función de la zona de piel de las características personales, apareciendo a nivel general un claro dimorfismo sexual: los hombres acumulan más adiposidad en el abdomen, las por encima del ombligo (patrón androide), mientras que las mujeres la acumulan por debajo del ombligo, en pelvis, nalgas y muslos (patrón ginecoide).

Se especula sobre la posibilidad de que los adipocitos solo progresen en número hasta etapas muy tempranas de la vida (antes de la pubertad); a partir de este momento, todos los aumentos de volumen corporal asociados a aumento de la grasa, se basarían en un aumento de tamaño de los adipocitos existentes (y la disminución de volumen, con una disminución de tamaño), sin que el número global de estos se altere en mayor medida.

El tejido fibroso separa a los adipocitos en grupos llamados lóbulos; y separa también a los lóbulos en grupos más pequeños denominados lobanillos.

La grasa no solo sirve como reserva de energía; ya hablamos de su papel como protección térmica, a la que hay que añadir una cierta protección mecánica y un moldeador importante de la figura y fisonomía del individuo.
Esquema de la piel.